抗毒蕈碱类药物 | 神经源性下尿路功能障碍专栏 018

毒蕈碱受体
逼尿肌的收缩主要是由于乙酰胆碱刺激了毒蕈碱受体引起的。毒蕈碱受体可以被毒蕈碱受体阻滞剂所阻滞,因此毒蕈碱受体阻滞剂在膀胱过度活动症的药物治疗中起着重要作用。
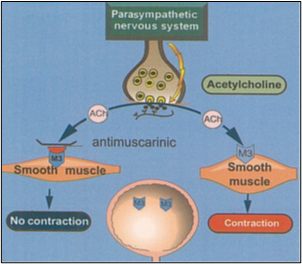
图1 逼尿肌的收缩主要由乙酰胆碱激活M3受体亚型引起
抗毒蕈碱药物作用在储尿期有减少尿急及增加膀胱容量的作用。正常情况下,在储尿期副交感神经没有神经冲动传入下尿路。抗毒蕈碱药物是一种竞争性拮抗剂,这意味着在排尿期当大量乙酰胆碱释放时,抗毒蕈碱药物的效果会相应减弱,因此治疗剂量的抗毒蕈碱药物不会导致排尿期逼尿肌收缩力的明显下降。
但是超高剂量的抗毒蕈碱药物会导致逼尿肌收缩力的下降,进而可能发生尿潴留。在应用抗毒蕈碱药物治疗膀胱过度活动症(OAB)∕逼尿肌过度活动(DO)时所需的常规剂量范围内,几乎没有应用常规剂量的抗毒蕈碱药物会导致排尿期逼尿肌收缩功能明显降低的证据。此外,还有实验数据表明抗毒蕈碱药物还可以通过降低储尿期膀胱传入神经纤维活性(包括C纤维和Aδ纤维)起治疗作用。
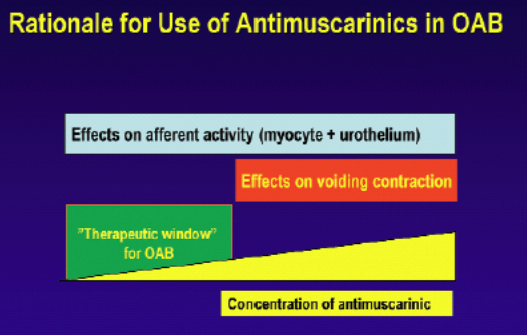
目前还不明了除了作用于逼尿肌外,抗毒蕈碱药物是否还存在其它作用机制,而这种作用对于治疗OAB∕DO是否有所帮助。在OAB∕DO相关的疾病中,抗毒蕈碱受体的功能可能会发生改变,这提示在正常情况下临床上一些次要的(潜在的)作用机制可能会参与调节,并且参与了OAB∕DO的病理生理过程。
在膀胱尿路上皮以及尿路上皮下层均发现有M受体存在,并且M受体在膀胱尿路上皮层的密度高于其在逼尿肌内的密度。尿路上皮层在膀胱激活中的作用引起了大家的关注,但是尿路上皮层中的M受体是否参与并影响排尿过程目前还无定论。Yoshida等发现在人类膀胱中有低度基础剂量的乙酰胆碱释放,这种活动能够不被河豚毒素所抑制,而切除尿路上皮后这种低度基础剂量的乙酰胆碱释放基本消失。因此,这种低度基础剂量的乙酰胆碱释放可能不是神经来源的,至少部分是由尿路上皮所产生的。
在膀胱充盈期也有乙酰胆碱释放的间接临床证据。1974年Smith等发现在新发的脊髓损伤患者中,应用胆碱酯酶抑制剂来抑制乙酰胆碱的破坏,能够增加静息张力并诱导膀胱节奏收缩。2001年Yossepowitch等应用依酚氯胺来抑制排尿功能障碍或尿失禁患者的乙酰胆碱降解,他们发现78%的膀胱过度活动症患者的膀胱感觉发生了明显的变化,膀胱容量减少,诱发或加剧了逼尿肌不自主收缩的幅度,逼尿肌顺应性明显降低。因此,在储尿期乙酰胆碱可能通过神经来源和非神经来源(例如尿路上皮)两条通路释放,通过增加逼尿肌张力直接或间接地兴奋位于尿路上皮下层或逼尿肌内的传入神经。在OAB∕DO的病理生理过程中,这是一个很重要的机制,可能会成为今后抗毒蕈碱药物的作用靶点。
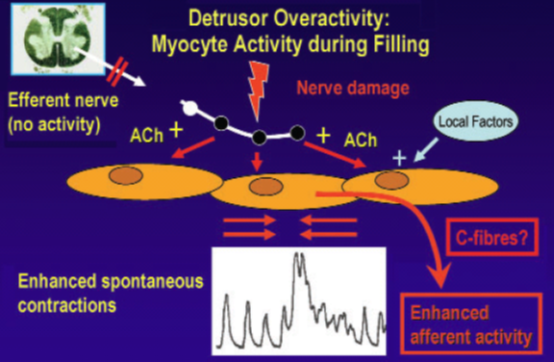
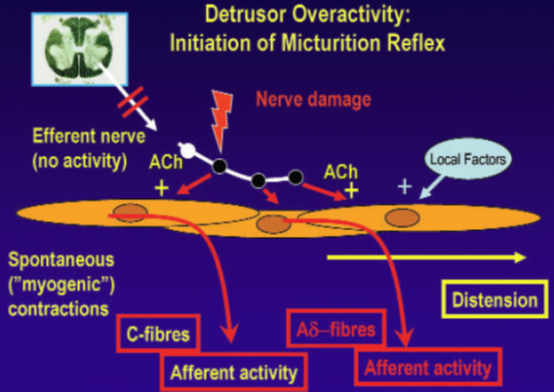
图3 乙酰胆碱在OAB∕DO中的作用机制假说。正常情况下,在储尿期副交感神经没有神经冲动传入下尿路,但膀胱中仍有低度基础剂量的乙酰胆碱释放,这种低度基础剂量的乙酰胆碱释放至少部分是由尿路上皮所产生的。在OAB∕DO时,由于神经损伤等因素乙酰胆碱泄露,激活了膀胱传入神经纤维活性(包括C纤维和Aδ纤维),诱发了逼尿肌不稳定和排尿反射的提前。
通常,抗毒蕈碱药物被分为叔胺(三元化合物)和季胺(四元化合物)两大类。它们在亲脂性、分子电荷上差别较大,在分子大小上也有较小的差别。三元化合物通常比四元化合物有更高的亲脂性和更少的分子电荷。
阿托品(Atropine)、托特罗定(tolterodine)、奥昔布宁(oxybutynin)、丙哌凡林(propiverine)、达非那新(darifenacin)和索利那辛(solifenacin)都是三元的叔胺类化合物。它们通常能够从胃肠道良好吸收,理论上能够进入中枢神经系统,这取决于它们具体的物理化学特性。高亲脂性、小分子和低电荷会增加药物通过血脑屏障的机会。
四元的季胺类化合物,像溴丙胺太林 (普鲁本辛)(propantheline)和曲司氯铵(trospium),不能被很好地吸收,不易透过血脑屏障,进入中枢神经系统的量有限,很少发生中枢神经系统副作用。但它们还能导致常见的外周抗毒蕈碱副作用,如调节麻痹、便秘、心动过速和口干等。
许多抗毒蕈碱药物(包括所有目前使用的叔胺类药物)都能够被P450酶系的代谢来激活或灭活。最常涉及到的P450酶是CYP2D6和CYP3A4。抗毒蕈碱药物通过同一酶系代谢转化,理论上产生了药物之间相互作用的风险,导致抗毒蕈碱药物血浆浓度和作用效果的相互作用抑制或者增加。理论上通过肾小管主动分泌排泄的抗毒蕈碱药物(例如曲司氯铵),可能由于这种代谢机制会影响其它药物的清除。
目前抗毒蕈碱药物仍然是应用最广泛的治疗尿急和急迫性尿失禁的药物。但是,由于当前使用的抗毒蕈碱药物缺乏对膀胱的选择性,在使用中会对其它系统的器官产生副作用,从而限制了它们的使用。例如,所有的未经治疗的窄角型青光眼患者都禁忌使用抗毒蕈碱药物。
理论上如果介导膀胱收缩的毒蕈碱受体亚型和产生抗毒蕈碱药物主要副作用的受体亚型不同,就有可能研发出针对膀胱有高度选择性的药物,而事实上却并非如此。能够避免诸多抗毒蕈碱副作用的方法是膀胱腔内给药,但膀胱腔内给药只能应用于一小部分患者。
目前人类被确定的毒蕈碱受体亚型有五种(M1-M5)。这些受体存在于各种器官中,它们被激活后可以产生不同的作用,总结见下表:
表1 毒蕈碱受体的亚型及其作用
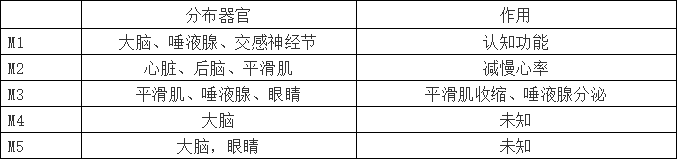
在膀胱中主要是M2和M3受体亚型为主。研究已经证明五种受体亚型在人类膀胱中都有分布,但M2和M3受体亚型占明显优势,其中M2受体亚型占毒蕈碱受体总数的80%,M3受体亚型占20%。
M2 受体在逼尿肌M 受体中比例最多,但是它在正常膀胱组织中不能直接介导逼尿肌的收缩,一般认为M2受体是与Gi 蛋白偶联,减少了cAMP 的产生,逆转了β肾上腺素能介导的舒张,间接介导逼尿肌收缩。但是Minoru 等通过运用M3 受体基因敲除小鼠的研究,认为M2 受体在膀胱收缩中可以发挥作用,但不是主要作用。
逼尿肌的收缩主要由乙酰胆碱激活M3受体亚型引起。M3受体亚型被认为是在介导人类膀胱逼尿肌收缩中起最重要的作用。M2受体亚型的作用还不是很清楚,在正常情况下M2受体亚型的作用似乎并不显著,而在神经源性膀胱功能障碍中才会增加。Pontari等进行了神经源性膀胱患者的逼尿肌条体外实验,根据逼尿肌条对不同拮抗剂的药理亲和力,认为在神经源性膀胱中,M2 受体直接介导了膀胱逼尿肌的收缩。
毒蕈碱受体阻滞剂的作用机制
毒蕈碱受体阻滞剂是通过同乙酰胆碱相互竞争结合毒蕈碱受体而起作用。毒蕈碱受体是与G蛋白相耦联的,但它的信号传导系统有多条途径。通常认为,M1、M3和M5受体优先与Gq/11耦联,能够使磷酸肌醇水解,并进而影响钙离子的跨膜活动。M2和M4受体与百日咳毒素敏感的Gi/o耦联,抑制腺苷酸环化酶的活性。在人类逼尿肌中,2004年Schneider等确定了介导卡巴胆碱诱导收缩的毒蕈碱受体亚型是M3受体,也证明了尽管磷脂酶C抑制剂U-73122能够阻断1,4,5-三磷酸肌醇脂生成,但并不能显著影响卡巴胆碱诱导引起的膀胱收缩。他们总结,卡巴胆碱诱导的人类膀胱收缩主要是通过M3受体介导的,依靠硝苯地平敏感的钙离子通道和Rho激酶途径的激活。因此,逼尿肌中毒蕈碱M3受体的主要激活途径可能是经L-型钙离子通道的钙离子内流,以及通过激活Rho激酶来抑制肌球蛋白轻链磷酸酯酶,从而使收缩结构对钙离子的敏感性增加。
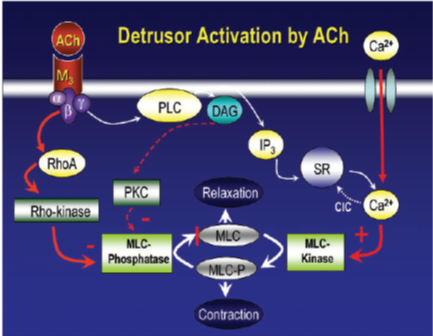
图4 M3受体引起逼尿肌收缩的主要途径
毒蕈碱受体阻滞剂主要是在储尿期发挥作用。在储尿期乙酰胆碱的分泌量很少,毒蕈碱受体阻滞剂能够有效地同乙酰胆碱竞争结合胆碱能受体。在排尿期乙酰胆碱分泌大量增加,毒蕈碱受体阻滞剂的作用被抵消。
声明:本内容仅代表嘉宾观点,不代表学习联盟平台立场。本内容仅供医学药学专业人士阅读,不构成实际治疗建议。转载请后台联系授权,侵权必究!
编辑:王靖
审核:王冬